Octobre 2026
Au-delà des fonctions de digestion et d’absorption qu’il assure, l’intestin est capable de détecter les nutriments qui sont déversés dans sa lumière (on parle de « nutrient sensing ») et d’informer rapidement le cerveau sur la quantité et la nature de ces apports nutritionnels. Mais concrètement, comment s’opère ce processus, capital pour garantir l’homéostasie énergétique [1] ? Une revue présente les structures neuronales en jeu, les hormones intestinales impliquées et le rôle joué par un acteur encore (trop) peu considéré dans les mécanismes actuels : le microbiote intestinal.
Les neurones vagaux afférents, autoroute de la communication intestin > cerveau
Les chercheurs commencent par présenter la voie traditionnellement considérée comme la voie de communication principale entre l’intestin et le cerveau : le nerf vague. Ce nerf doit son nom au latin vagus, qui signifie « errant » au sens premier du terme, c’est-à-dire qui parcourt un trajet étendu dans diverses directions. Les longues ramifications du nerf vague prennent en effet naissance dans le tronc cérébral et innervent la plupart des organes viscéraux, dont l’intestin. Les informations provenant de l’intestin circulent via les neurones afférents [2] du nerf vague (VAN), qui sont capables de relayer à la fois des signaux de nature mécanique (ex. degré de distension intestinale) et chimique (hormones sécrétées par les cellules intestinales à l’arrivée de nutriments ; voir la partie suivante de l’article). L’activation des terminaisons vagales génère un message nerveux qui se propage jusqu’au cerveau, atteignant d’abord le tronc cérébral. L’information est ensuite relayée vers d’autres centres cérébraux, et en particulier vers l’hypothalamus. C’est là (dans le noyau arqué) que se trouvent les fameux neurones AgRP/NPY (orexigènes [3]) et POMC/CART (anorexigènes [4]), deux populations neuronales aux effets antagonistes qui régulent la prise alimentaire en modulant la faim et la satiété.
À noter, en plus du nerf vague, le système nerveux entérique participerait également à la communication intestin > cerveau. Souvent qualifié de « 2e cerveau », il s’agit d’un réseau neuronal localisé dans la paroi intestinale, capable d’assurer certaines fonctions (transit & motilité…) de façon autonome (sans commande cérébrale). Etant lui-même innervé par des afférences vagales, il est considéré comme un relai supplémentaire permettant de rendre compte des informations intestinales au cerveau.
Détecter les nutriments et passer l’information : le double rôle des cellules entéro-endocrines
Les chercheurs zooment ensuite sur la genèse des signaux chimiques capables d’activer la voie vagale afférente, au niveau de l’épithélium intestinal. La capacité de l’intestin à envoyer au cerveau des informations sur l’arrivée des nutriments est permise grâce à un ensemble de cellules hautement spécialisées, capables de produire des hormones : les cellules entéro-endocrines (ECC). Ces cellules ne représentent que 1 % des cellules tapissant l’épithélium intestinal mais forment le plus grand organe endocrinien de l’organisme. Schématiquement (Figure 1), leur membrane apicale (en haut sur la figure), en contact direct avec la lumière intestinale, exprime des récepteurs permettant la détection des nutriments [5]. Cette détection donne lieu à une cascade de réactions intracellulaires conduisant à la libération d’hormones du côté de la membrane basale de la cellule, dans le milieu extracellulaire et à proximité des vaisseaux sanguins et des nerfs accolés à l’épithélium intestinal (points bleus en bas sur la figure).
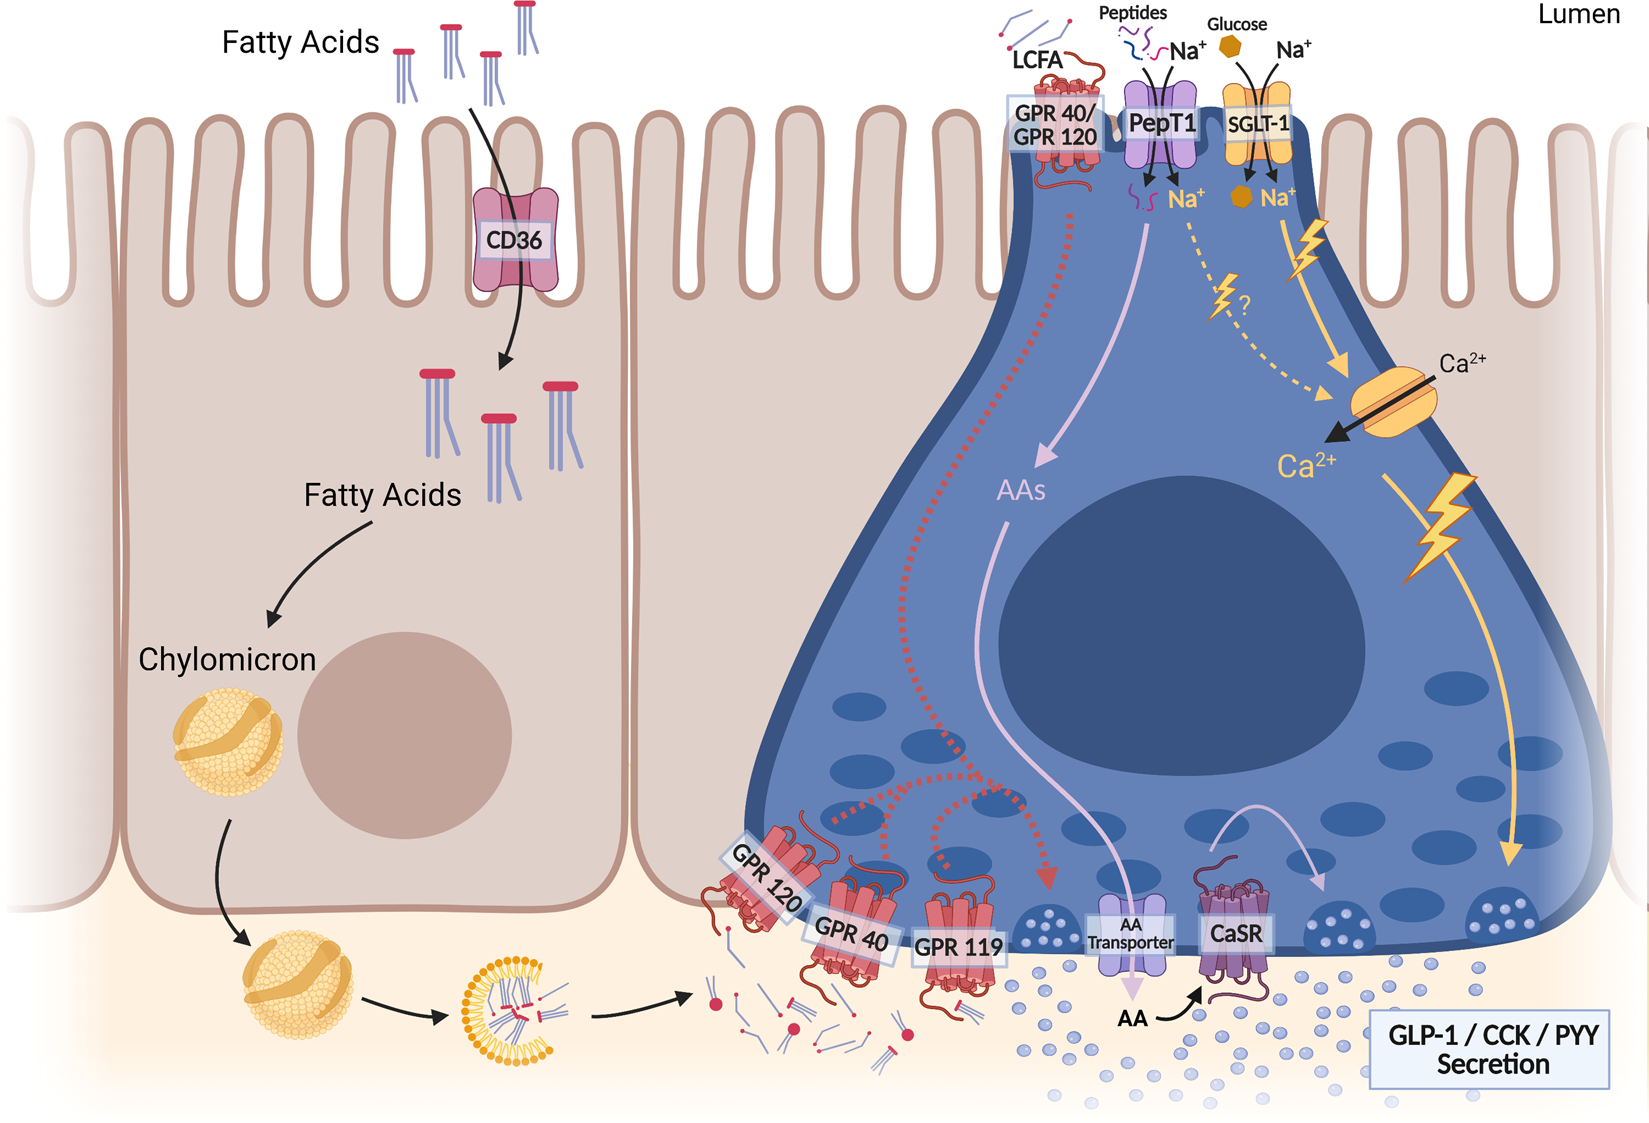 Figure 1 : Les cellules entéro-endocrines, à l’origine du nutrient sensing
Les cellules entéroendocrines (ECC) détectent les différents nutriments présents dans la lumière intestinale (lumen) grâce à des récepteurs membranaires et convertissent ces signaux en une réponse hormonale, par la sécrétion de peptides intestinaux (points bleus en bas sur la figure) impliqués dans la régulation de la satiété (GLP-1, CCK, PYY). Les lipides peuvent aussi être détectés après avoir transités dans les entérocytes sous forme de chylomicrons (partie gauche de la figure)
Les cellules entéro-endocrines sont historiquement classifiées selon le type d’hormone (GLP-1, CCK…) qu’elles libèrent ; toutefois des données récentes montrent que certaines cellules sont capables de libérer plusieurs types d’hormones, et que le sécrétome [6] de ces cellules seraient plutôt lié à leur degré de maturité qu’à un lignage différent.
Une multitude d’hormones intestinales impliquées dans la satiété et le métabolisme
Si plus de 20 types d’hormones sécrétées par les cellules entéro-endocrines sont connues, la revue s’arrête essentiellement sur deux d’entre elles, parmi les plus étudiées :
- le GLP-1, sécrété par certaines cellules entéro-endocrines en réponse à l’arrivée de sucres, de lipides et d’acides aminés dans l’intestin ;
- la cholécystokinine (CCK), principalement libérée en réponse à l’arrivée de lipides et de protéines.
Leur voie d’action principale passerait par l’activation des neurones afférents du nerf vague – qui expriment des récepteurs à ces hormones – cette activation conduisant à une réponse cérébrale inhibant la prise alimentaire.
En plus de la voie vagale, une action hormonale à distance (voie sanguine) sur le noyau arqué de l’hypothalamus est également décrite pour certaines hormones. C’est notamment le cas du peptide YY (autre hormone satiétogène sécrétée par des cellules entéro-endocrines).
A noter, des cellules entéro-endocrines hautement spécialisées ont été récemment découvertes : elles possèdent un appendice à leur extrémité basale (appelé neuropode) formant une synapse directe avec les fibres afférentes du nerf vague. Cette spécificité anatomique permet la transmission d’une information plus directe et rapide au cerveau sur l’arrivée de nutriments.
Le microbiote intestinal : un modulateur encore peu étudié
Enfin, les chercheurs rassemblent dans une dernière partie les données pointant le rôle potentiel du microbiote intestinal comme modulateur de la communication intestin > cerveau. Des travaux montrent notamment que chez des souris dépourvues de microbiote, la sécrétion de GLP-1 est modifiée (augmentée) et l’activation du système nerveux entérique perturbée. Les acides biliaires présents dans l’intestin (dont la composition est façonnée par le microbiote) et les acides gras à chaîne courte produits par le microbiote pourraient être à l’origine des effets de ce dernier : entre autres mécanismes, ces composés sont par exemple capables de modifier la détection des nutriments et la sécrétion d’hormones par les cellules entéro-endocrines en se fixant à certains récepteurs de ces cellules (ex. TGR-5, FXR, GPR43…).
Encore de nombreux mécanismes à décrypter
Si la présente revue donne une vue d’ensemble des voies de communication existantes entre l’intestin et le cerveau et présente les mécanismes d’action les plus plausibles selon les données actuelles (Figure 2), les chercheurs soulignent en conclusion que ces mécanismes restent encore peu élucidés. Les données les plus récentes pointent la très haute complexité des processus à l’œuvre, interreliés, et font naître de nouveaux débats quant aux voies les plus significativement impliquées (voie neuronale ? voie endocrine ? système vagal vs système nerveux entérique ?). Quoi qu’il en soit, la poursuite du décryptage de ces voies complexes de transmission des signaux intestinaux au cerveau sera déterminante pour inspirer les stratégies thérapeutiques de demain ciblant les dérégulations de la prise alimentaire et de l’homéostasie énergétique.
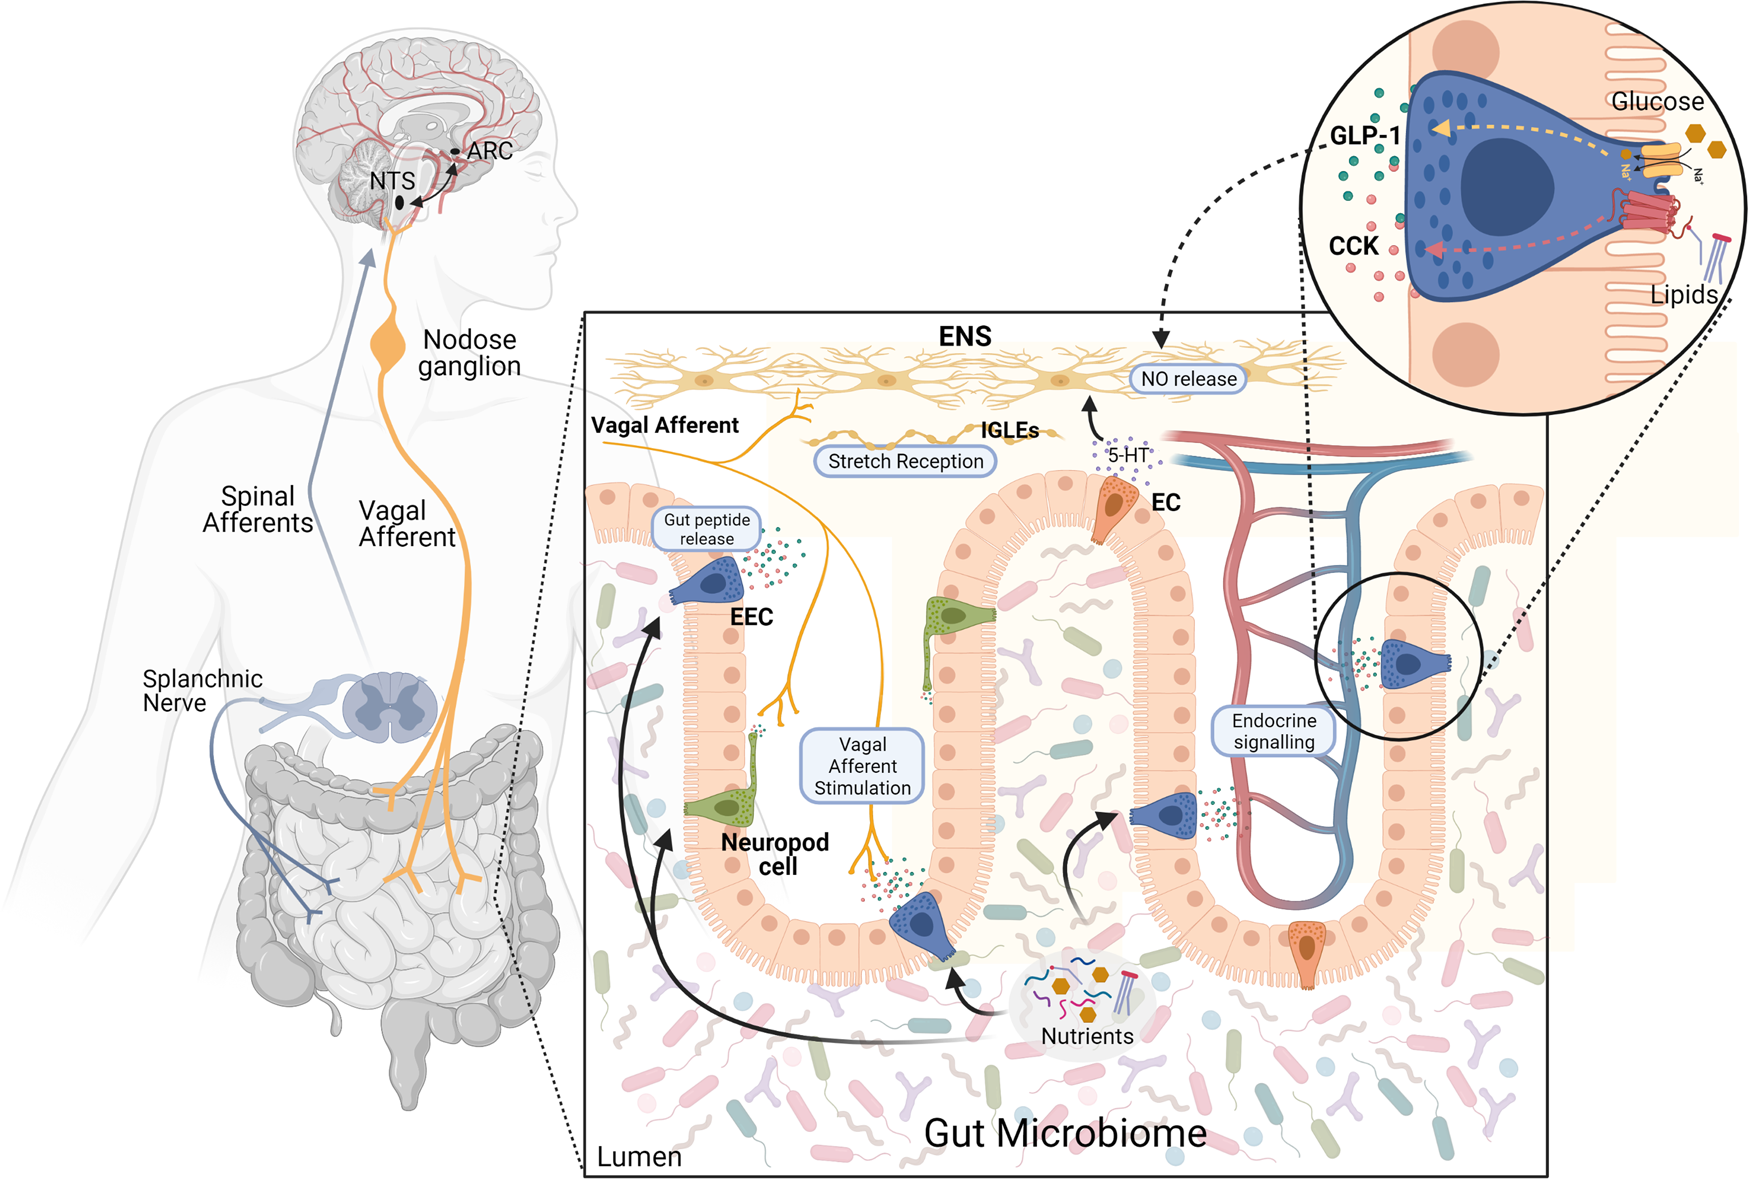 Figure 2 : Les principaux médiateurs de la communication intestin > cerveau
Des cellules spécialisées de l’épithélium intestinal, notamment les cellules entéroendocrines (ECC) (en bleu) et les cellules neuropodes (en vert) sécrètent des peptides intestinaux tels que le GLP-1, la CCK, et le PYY. Ces peptides sont libérés à proximité des neurones afférents du nerf vague qui innervent la muqueuse intestinale, ce qui permet leur activation. Les neurones vagaux transmettent ensuite l’information au noyau du tractus solitaire (NTS), qui peut à son tour transmettre des signaux vers des régions cérébrales supérieures, comme le noyau arqué (ARC) de l’hypothalamus.
Les neurones vagaux peuvent également être activés indirectement par le système nerveux entérique (ENS) ou par l’étirement de la paroi intestinale.
Enfin, les peptides intestinaux peuvent aussi passer dans la circulation sanguine et transmettre leurs signaux directement au NTS.
Voir tous les articles du numéro spécial
[1] Maintien de l’équilibre entre l'énergie qui entre dans le corps et l'énergie qui est utilisée ou stockée.
[2] Dans les neurones afférents, l’information circule depuis les organes périphériques vers le système nerveux central (par opposition aux neurones efférents où l’information circule depuis le cerveau vers la périphérie).
[3] Qui stimulent l’appétit
[4] Qui inhibent l’appétit
[5] Pour certains nutriments (par exemple les lipides relargués des chylomicrons après transit sous cette forme dans les entérocytes), des récepteurs existent aussi au niveau de la membrane basale
[6] L’ensemble des molécules sécrétées